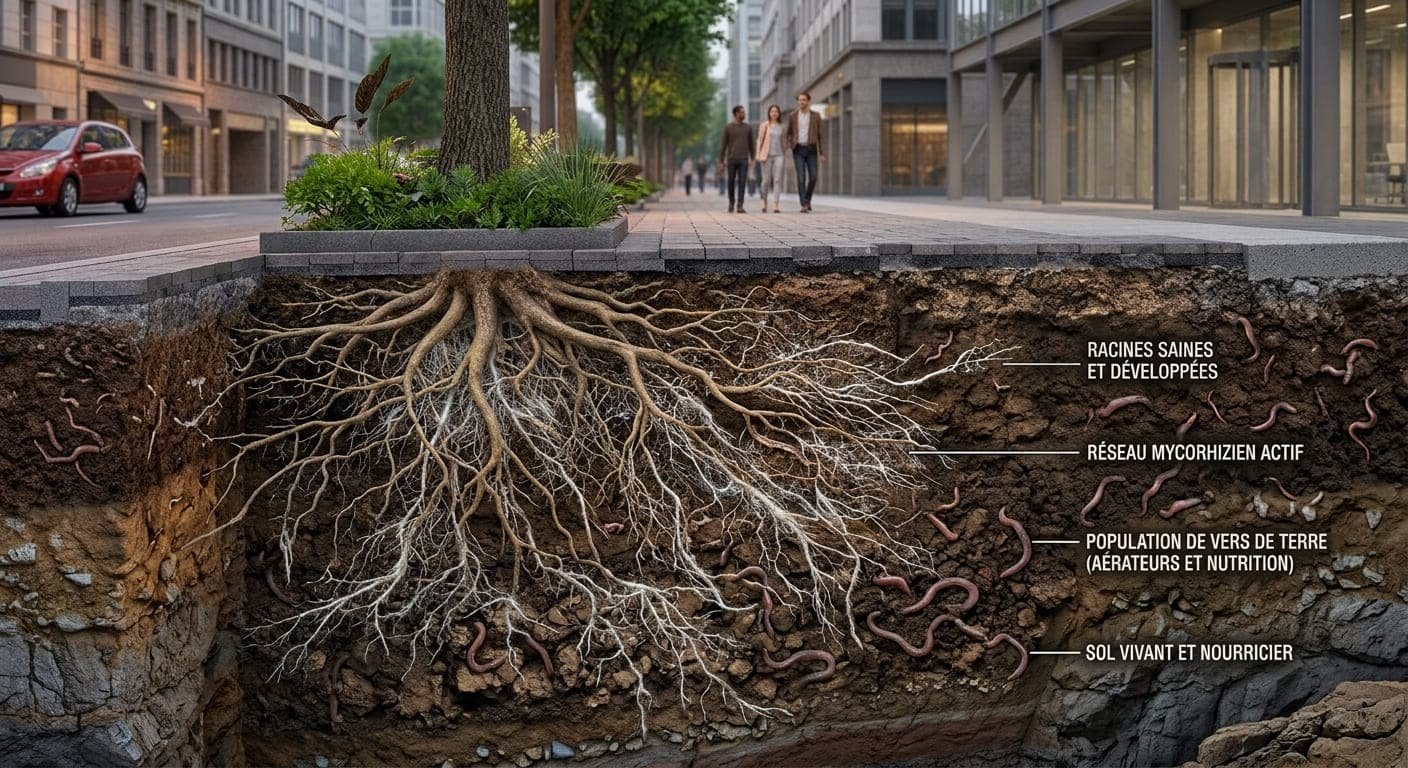
Un arbre planté avec un système racinaire intact ne s’établit pas correctement si le sol qui l’accueille a perdu sa capacité biologique à le nourrir, à l’aérer et à retenir l’eau à sa portée. La qualité de la plante et la qualité du sol sont deux conditions distinctes, et aucune ne compense l’absence de l’autre.
C’est cette seconde condition — moins visible, donc moins discutée dans les cahiers des charges — qui détermine si une plantation urbaine devient pérenne ou reste un ensemble de tuteurs soutenant des arbres qui végètent.
Le sol urbain a perdu l’essentiel de ses fonctions biologiques
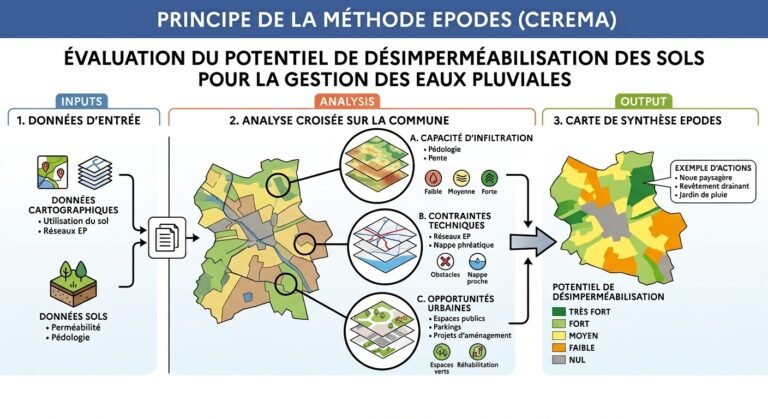
Les sols en ville ne sont pas de simples variantes appauvries des sols naturels : ils ont subi une transformation structurelle. Le Cerema le formule dans ses travaux sur les sols urbains et péri-urbains — les sols se trouvent au croisement de plusieurs enjeux (artificialisation, gestion des eaux pluviales, préservation de la biodiversité, stockage du carbone) et doivent être considérés dans leurs différentes dimensions plutôt que réduits à leur seul rôle de support du bâti.
Dans ses actions d’accompagnement des collectivités, l’organisme constate que les sols urbains sont souvent très anthropisés, scellés, et qu’ils ont perdu une grande partie de leurs fonctionnalités. Un sol scellé ou compacté depuis des décennies n’est plus seulement pauvre en éléments nutritifs : il a perdu les organismes et les réseaux qui, dans un sol fonctionnel, transportent l’eau, l’aèrent et construisent une structure poreuse. C’est ce déficit, plus que la seule pauvreté chimique, qui peut condamner une plantation mal préparée1.
Un sol vivant ne se limite pas à un substrat qui retient les racines
La confusion la plus répandue dans les projets de végétalisation consiste à traiter le sol comme un simple contenant — une masse à ameublir, amender une fois, puis laisser évoluer seul. Un sol vivant fonctionne à l’inverse comme un système actif où des organismes distincts, à des échelles différentes, construisent et entretiennent en continu la porosité, la rétention d’eau et l’accès aux nutriments. Cette activité ne se décrète pas par un simple apport de terre végétale : elle se restaure, ou elle se préserve quand elle existe encore, et elle se prend en compte dans le choix du site, la préparation du sol et le suivi qui accompagne la plantation.
Les vers de terre : ces ingénieurs souterrains qui structurent la porosité et l’infiltration
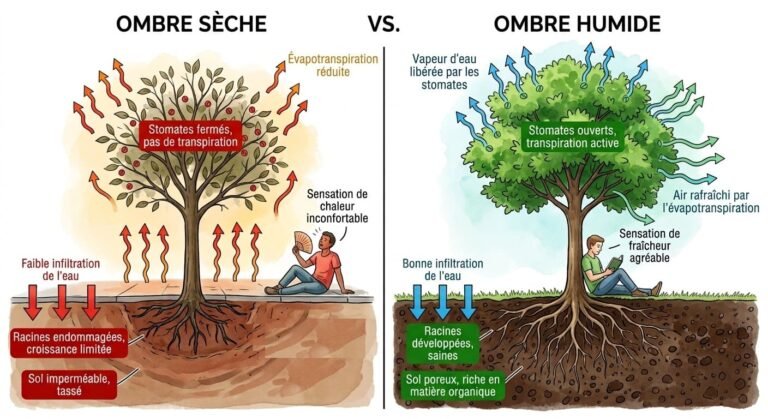
Les vers de terre endogés, ceux qui creusent horizontalement dans les premiers centimètres du sol, ont longtemps été considérés comme moins déterminants que les espèces anéciques qui creusent des galeries verticales continues. Une étude de référence conduite par l’INRAE a nuancé ce constat en mesurant directement, par tomographie aux rayons X, l’effet de leur activité : le volume de macropores augmente de façon significative et quasi linéaire avec l’abondance des vers de terre et avec le temps d’incubation, un résultat obtenu sur un sol d’un verger où l’espèce endogée Allolobophora chlorotica dominait la population2. Cette architecture souterraine conditionne directement la vitesse de croissance des racines ainsi que la vitesse à laquelle une pluie s’infiltre plutôt que de ruisseler (et par conséquent la disponibilité en eau pour les racines qui colonisent ce même horizon de sol).
Les champignons mycorhiziens prolongent le système racinaire sans le remplacer
Une part significative des espèces ligneuses vit en symbiose avec des champignons mycorhiziens, dont les filaments (les hyphes) explorent un volume de sol bien supérieur à celui que les racines atteignent seules. Une étude publiée en 2022 apporte une preuve directe, par marquage isotopique, de ce que cette extension représente concrètement : dans un dispositif où les hyphes seuls avaient accès à un compartiment d’eau marquée, l’eau transportée par les champignons mycorhiziens à travers l’espace séparant les compartiments représentait 34,6 % de l’eau transpirée par les plantes hôtes3. Des travaux plus récents, menés en 2024, confirment que cette contribution n’est pas négligeable et proposent une méthode expérimentale en compartiments séparés pour la quantifier plus précisément4.
Cette même symbiose contribue aussi à la structure du sol par un mécanisme plus contesté qu’il n’y paraît. Les hyphes mycorhiziens sécrètent une glycoprotéine, longtemps désignée sous le nom de « glomaline », à laquelle on attribue un rôle de liant entre les particules du sol. Une revue critique publiée en 2021 dans New Phytologist a toutefois établi que la substance réellement extraite en laboratoire — le « glomalin-related soil protein » — n’est pas spécifique aux champignons mycorhiziens et regroupe un mélange de composés dont l’origine exacte reste débattue5. Le rôle des hyphes dans l’agrégation du sol reste documenté ; l’identité moléculaire précise du composé qui en serait responsable ne l’est pas encore. La prudence sur ce point n’affaiblit pas l’argument d’ensemble — elle en délimite honnêtement les contours.
Le réseau mycorhizien commun reste un terrain scientifique disputé
L’idée qu’un réseau mycorhizien commun permettrait aux arbres d’échanger ressources et signaux — popularisée sous l’expression « wood wide web » — a connu une diffusion nettement plus large dans les médias que dans la littérature scientifique qui la soutient réellement. Une synthèse publiée en 2023 dans Nature Ecology & Evolution a examiné les trois affirmations les plus courantes à ce sujet et conclu que les affirmations selon lesquelles ces réseaux seraient répandus en forêt et transféreraient des ressources améliorant la performance des semis sont insuffisamment étayées, les résultats des études de terrain variant trop largement, disposant d’explications alternatives ou restant trop limités pour permettre des généralisations⁶. La même année, une réexamination publiée dans New Phytologist portant spécifiquement sur l’hypothèse de « l’arbre mère » a conclu que les preuves empiriques en sa faveur sont en réalité très limitées et que les explications théoriques des mécanismes invoqués font largement défaut⁷. D’autres équipes de recherche contestent cette lecture et défendent la solidité des preuves de transfert de carbone entre arbres via ces réseaux ; le débat n’est donc pas tranché, et toute communication qui présenterait ce mécanisme comme un fait établi irait au-delà de ce que la littérature actuelle permet d’affirmer.
L’exigence sur la qualité racinaire
Un système racinaire intact, cultivé sans rupture depuis la graine ou la bouture, ne rencontre son plein potentiel que dans un sol capable de l’accueillir biologiquement. Ces deux exigences ne se substituent pas l’une à l’autre : un sol vivant ne rattrape pas un système racinaire endommagé par le repiquage ou le conteneur, et un système racinaire intact ne compense pas un sol mort, compacté sur plusieurs décennies. C’est pourquoi un diagnostic de sol — et pas seulement un diagnostic de canopée — a sa place avant toute décision de plantation, au même titre que le choix des essences ou la provenance des plants.
Cette exigence trace aussi une ligne de démarcation utile pour les maîtres d’ouvrage. Un projet qui prévoit un budget et un calendrier pour la préparation du sol, et qui accepte un suivi pluriannuel plutôt qu’une réception de chantier limitée à la plantation, s’inscrit dans cette logique. Un projet qui traite le sol comme une formalité entre le terrassement et la mise en terre, sans marge pour le diagnostiquer ni le restaurer, ne le peut pas — quelle que soit par ailleurs la qualité des plants choisis.
Restaurer un sol vivant est un engagement de méthode, pas un supplément esthétique
Le sol vivant n’est pas un argument de communication à ajouter à la présentation d’un projet de plantation : c’est la condition matérielle qui rend ou non pertinent tout ce qui a été décidé en amont sur le choix des essences et la qualité des plants. Le reconnaître implique d’accepter qu’une partie déterminante de la réussite d’une plantation urbaine se joue sous la surface, avant même que le premier arbre ne soit mis en terre.
[1] Ce constat est valable pour la quasi-totalité des arbres et arbustes. Cependant, il peut être différent pour les espèces pionnières telles que les peupliers, qui préparent la forêts et poussent sur des sols plus pauvres.
Source institutionnelle complémentaire :